
在追求健康与活力的道路上,亚精胺和精胺这两个名字越来越频繁地出现在科学研究和热门话题中。它们如同我们身体内的长寿助手,是重要的天然多胺家族成员。很多人会问:它们究竟是什么关系?是同一个人、还是亲兄弟?更重要的是,它们如何影响着我们身体的“清洁工”——细胞自噬,并与衰老过程息息相关?
事实上,亚精胺和精胺虽然共享着相似的“家族基因”,拥有紧密的代谢联系,但在细胞舞台上,它们又各自扮演着独特的角色。它们并非简单叠加的效果,理解它们真正的作用,需要我们深入多胺代谢的网络,去探寻它们各自精妙的调控机制。今天,就让我们一起拨开迷雾,深入了解这对多胺兄弟的科学真相!
在探索生命活动奥秘的过程中,多胺类化合物扮演着不可或缺的角色。亚精胺和精胺作为其中两种最为关键的天然多胺,它们不仅在细胞的生长、分化、增殖等基本生命过程中发挥作用,更是与细胞自噬、衰老调控等前沿研究领域息息相关。
1.生物体内不可或缺的多胺
亚精胺是一种具有三个氮原子的脂肪族多胺,其化学结构决定了它在细胞内能够参与多种生化反应,并对核酸、蛋白质等大分子产生重要影响。而精胺是一种含有四个氮原子的脂肪族多胺,其结构比亚精胺更复杂,氮原子数量更多,使其具有更强的带正电荷能力,这在某些生物学功能上可能带来更显著的效应。
2.同一代谢网络中的上下游关系
亚精胺与精胺并非孤立存在,而是同属一个动态、相互关联的多胺代谢网络。在哺乳动物的经典合成途径中,精氨酸先转化为鸟氨酸,鸟氨酸经鸟氨酸脱羧酶(ODC1)生成腐胺;腐胺随后在亚精胺合酶(SRM)作用下生成亚精胺,再经精胺合酶(SMS)生成精胺。这一过程还需要S-腺苷甲硫氨酸脱羧酶(AMD1)提供氨基丙基。
这种转化并非单向或完全自由。精胺可通过精胺氧化酶(SMOX)直接转回亚精胺;也可先经亚精胺/精胺N1-乙酰转移酶(SAT1)乙酰化,再由N1-乙酰多胺氧化酶(PAOX)氧化,生成亚精胺或腐胺。这些代谢过程受到细胞类型、生理状态、营养条件及多种信号通路的调控。
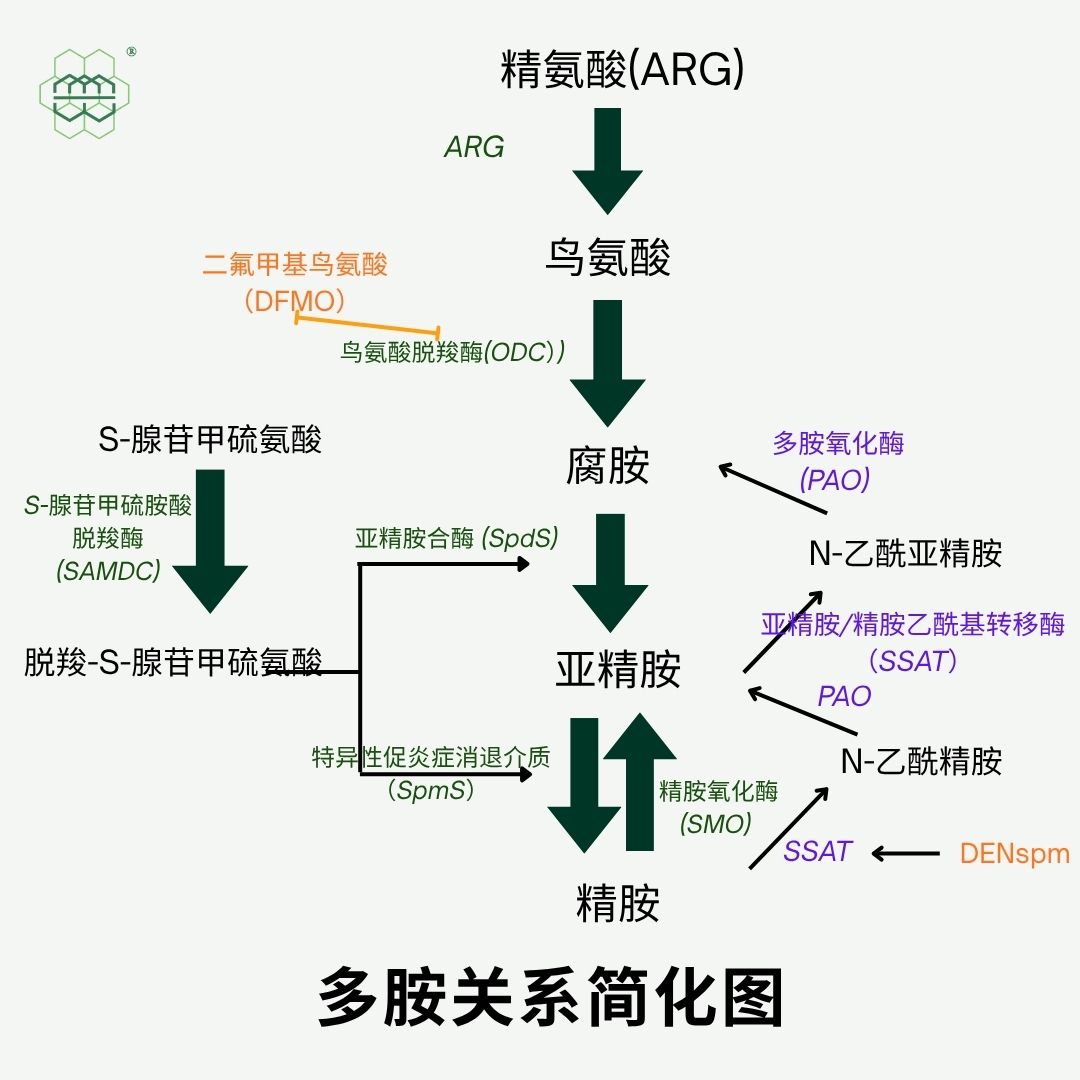
3.结构、代谢与功能的差异
尽管存在紧密的代谢联系,亚精胺与精胺在以下方面存在显著区别,这决定了它们在细胞内发挥作用的特异性。
1)结构差异:精胺比亚精胺多一个氮原子和两个亚甲基,结构上更为复杂,这可能影响其与生物大分子的结合能力和在细胞内的分布。
2)代谢调控的差异:它们在合成和降解过程中的关键酶和调控机制有所不同,使得它们在细胞内的浓度和动态变化趋势也可能存在差异。
3)功能特异性:正是基于这些结构和代谢的差异,亚精胺和精胺在细胞自噬诱导、蛋白质稳态维持、基因表达调控等方面,可能展现出各自独特的、甚至互补的作用模式。它们之间存在代谢联系不等于可以相互替代。
4.为何深入探讨它们的关系?
深入理解亚精胺与精胺之间的关系及其各自的作用机制,对于我们把握生命体的基础功能、应对衰老挑战,乃至开发创新性的原料解决方案,都具有至关重要的意义。
1)精准调控生命过程:明确它们各自在多胺代谢网络中的定位,有助于我们理解细胞如何精细调控生命活动。例如,在研究细胞自噬这一关键的细胞回收系统时,区分亚精胺和精胺在诱导或调节自噬通路中的具体作用,能为理解衰老、疾病发生机制提供更精确的视角。
2)科学评估原料价值:作为领先的多胺类原料供应商,麦轮深知,客户在开发各种终端产品(如保健品、化妆品、功能性食品等)时,需要基于科学严谨的信息进行选择。我们不仅提供高品质的亚精胺和精胺原料,更致力于分享我们对这些物质深层生物学机制的理解。了解它们的细微差异,有助于客户根据特定应用场景,选择最合适的原料,实现最佳的效果。
3)引领行业发展:对多胺类化合物的精细化研究,是推动生命科学与健康产业发展的关键。麦轮始终站在行业前沿,持续投入研发,为合作伙伴提供具有科学洞察力的产品和技术支持。
我们刚才聊了亚精胺和精胺这对多胺兄弟在细胞代谢网络中的复杂关系。那么,它们各自又在哪些关键的细胞活动中扮演重要角色呢?我们先聚焦亚精胺,来看看它与一个对细胞健康至关重要的过程——细胞自噬——有何关联。
1.自噬为何重要?
细胞自噬,顾名思义,就是细胞自己吃自己的过程。但这不是一种“自残”行为,而是一种高效的细胞自我净化和资源回收机制。它负责识别并清除细胞内老旧、受损的蛋白质、损伤的细胞器(比如能量工厂线粒体)以及入侵的病原体。想象一下,就像一个高效的垃圾处理系统,能够保持细胞内部的整洁与有序,这对维持细胞的正常功能、应对压力和延缓衰老至关重要。
2.亚精胺:自噬过程的微妙影响者
正是因为自噬在细胞成分降解、回收和稳态维持中如此重要,科学家们才持续研究能够调控这一过程的分子。近年来,亚精胺因其在多种实验模型中展现出的对自噬调节的影响而备受关注。不过,这并不意味着亚精胺是直接开启自噬的“万能钥匙”,而是可以通过不同途径参与自噬的启动与调节。
机制一:抑制EP300,影响自噬相关蛋白的乙酰化
EP300是一种乙酰转移酶,可对ATG5、ATG7、ATG12和LC3等自噬相关蛋白进行乙酰化修饰。研究发现,亚精胺可与乙酰辅酶A竞争EP300的结合位点,抑制其乙酰转移酶活性,从而降低相关蛋白的乙酰化水平。[1]这一变化有利于增强自噬通量,为理解亚精胺与自噬启动之间的联系提供了重要机制线索。
机制二:参与eIF5A的hypusination,支持TFEB合成
另一条重要的机制,则指向了蛋白质的合成调控。在细胞内,信息传递和蛋白质的生产过程极其精细。亚精胺是翻译因子eIF5A发生hypusination修饰的底物。该修饰有助于维持eIF5A的功能,并支持TFEB蛋白的合成。TFEB是调控自噬与溶酶体功能的重要转录因子,参与调节多种细胞内降解和回收相关基因的表达。[2]因此,通过eIF5A–TFEB通路,亚精胺为自噬调节提供了另一条可能的机制路径。
需要强调的是,上述关于亚精胺调控自噬的发现,多来源于特定细胞模型或动物实验。它们为我们理解亚精胺的分子作用机制提供了宝贵的线索。然而,这不应被直接等同于口服补充亚精胺后,人体内必然会产生完全相同、直接的自噬效应。实际效果可能受到个体差异、摄入剂量、吸收代谢、肠道环境以及整体生理调控等多种因素的影响。
通过影响EP300和eIF5A–TFEB等通路,亚精胺能够以一种“幕后调控者”的方式参与细胞自噬,这为研究其在维持细胞稳态及衰老相关过程中的作用提供了机制线索,但相关结论仍需结合具体研究条件谨慎解读。
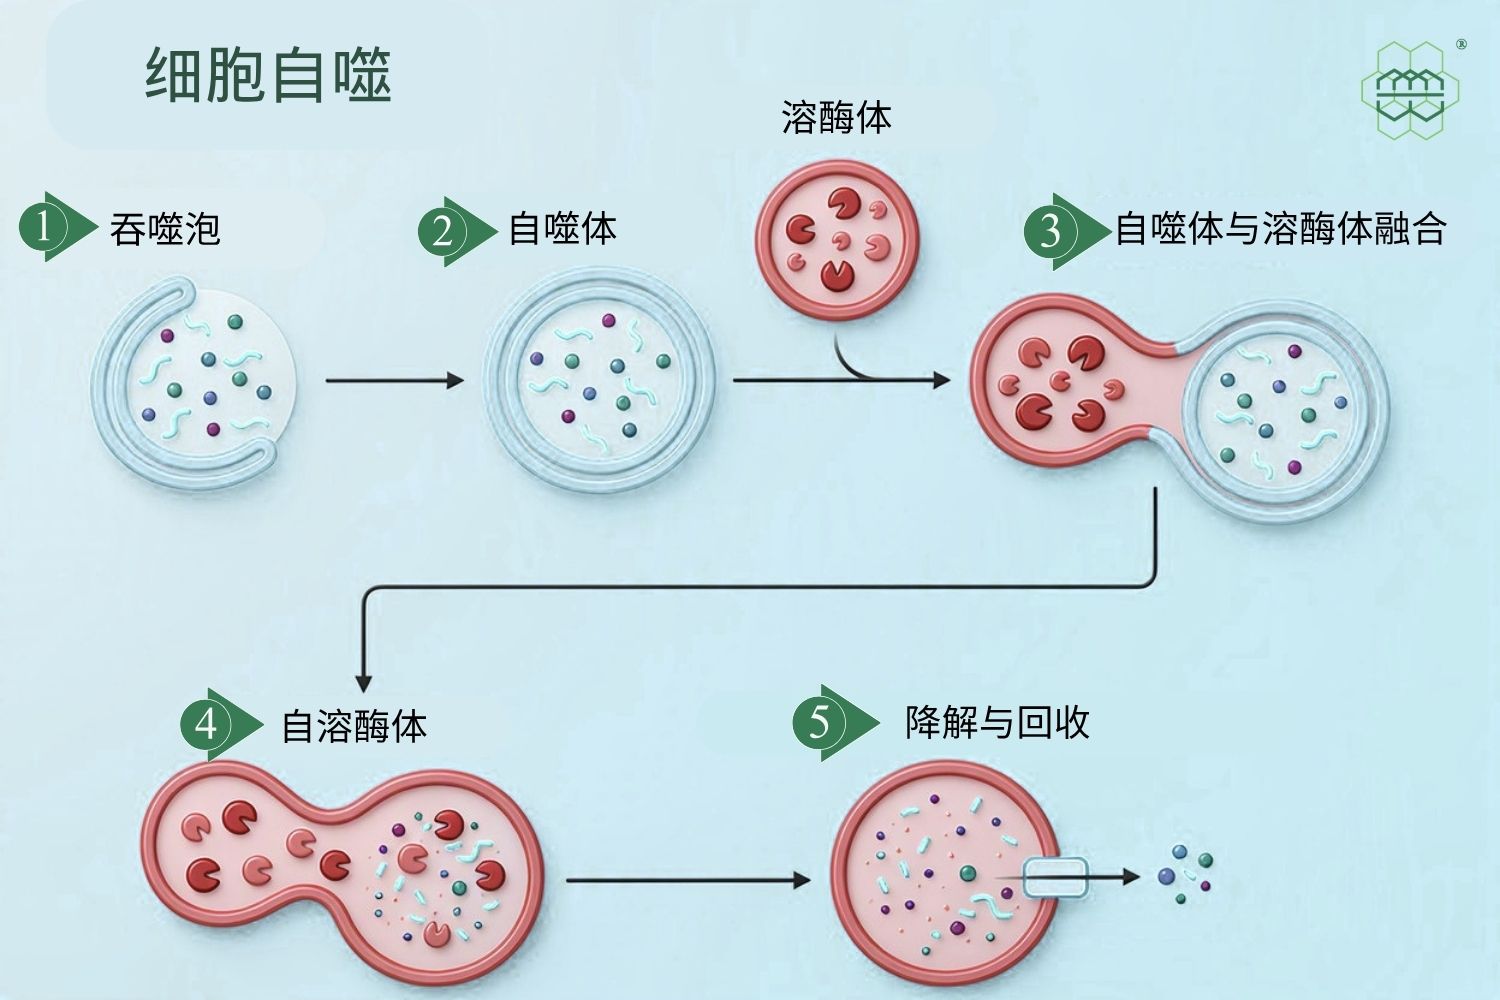
在我们刚刚探讨了亚精胺如何影响细胞的自我净化系统——细胞自噬之后,很多人会自然地问:作为结构更复杂的“亲兄弟”,精胺在细胞自噬中又扮演着怎样的角色呢?
1.精胺与自噬研究的交集
确实,精胺同样是细胞自噬相关研究中的重要关注对象。科学研究已经观察到,精胺也可能参与到调控细胞自噬的过程中,尽管与亚精胺相比,其独立机制的研究可能更为初步或复杂。
研究观察到的蛛丝马迹。
在一些体外细胞实验中,研究人员会对细胞(例如,取自老年人的免疫细胞)进行精胺或亚精胺处理,并观察自噬相关标志物的变化。有研究显示,虽然两者均可能引起自噬相关变化,但它们对细胞因子等免疫指标的影响并非完全一致,这暗示了它们在调控复杂细胞功能时,可能存在作用的侧重或差异。
在一些动物衰老模型(如SAMP8脑衰老小鼠)中,也有研究探索了精胺和亚精胺干预后,自噬相关蛋白水平以及线粒体功能的变化。[3]这些研究为理解多胺代谢与细胞能量稳态、清除机制的相互作用提供了一线索,表明精胺可能通过影响这些关键的细胞过程来间接作用于自噬。
2.理解精胺作用的精细视角
尽管这些研究提示了精胺可能具有探索性的自噬调节作用,但我们必须认识到精胺的结构(四个氮原子、更强的正电荷)可能使其在细胞内与生物大分子(如核酸、蛋白质、膜结构)的相互作用方式与亚精胺有所不同。因此,我们不能直接将亚精胺已阐明的机制(如EP300或eIF5A-TFEB通路)简单套用在精胺身上,期望得到完全相同的效果。精胺可能通过独立的、或与亚精胺协同(也可能拮抗)的特定机制发挥作用。
这一点至关重要,也恰恰是体现我们专业性的地方。在解读任何关于多胺与自噬的研究结果时,研究条件是关键。例如,在体外细胞实验中,培养基的成分、尤其是血清(如牛血清)中可能含有的内源性酶(如牛血清胺氧化酶PAO),对外源性多胺的代谢和作用会产生显著影响。这些酶可能会降解一部分外源精胺,从而改变其在细胞内的实际浓度和作用效果。因此,不能仅凭观察到某个自噬指标(如LC3蛋白表达量)的增加,就直接断定是精胺促进了自噬,而忽略了实验体系的复杂性。[4]
现有研究更多是提示了一种关联或潜力,精胺在自噬调控中的确切机制、在不同细胞类型中的特异性以及其潜在的益处,仍是需要深入研究和探索的领域。
精胺与细胞自噬的关系,是一个复杂而值得深入探究的课题。它不仅体现在细胞模型中的观察,更与我们如何精确理解和应用这一物质息息相关。作为专业的原料供应商,麦轮致力于深入研究这些分子的作用机制,为客户提供基于科学证据的洞察,帮助您更准确地评估和开发基于精胺的创新应用。
我们已经分别探讨了亚精胺和精胺在细胞自噬这一重要生理过程中的可能作用。然而,生命体的精妙之处,往往在于各种分子和通路如何协同合作,共同维持一个动态的平衡——也就是我们所说的细胞稳态。那么,亚精胺与精胺又是如何在这个宏大的细胞稳态工程中贡献力量的呢?
1.稳态:细胞生存的动态艺术
首先,要理解稳态,它并非指细胞内物质含量的绝对稳定,而是一种精密的动态平衡。这意味着,细胞需要一套高效的机制,来实时感知环境变化,并动态地调节内部物质的合成、转化、降解和输出,以应对内外部的挑战,确保生命活动的有序进行。
2.多胺代谢网络:稳态的稳定基石
亚精胺与精胺以及它们在代谢网络中的前体和衍生物,正是构建和维护细胞稳态的关键组成部分。它们共同参与的多胺代谢网络,其作用远不止于合成和转化。
如前文所述,多胺的生成(合成)、转化(相互转化)和降解(分解)是一个动态的过程。细胞稳态的维持,关键在于这三者之间的精密平衡。当细胞面临压力时,这一网络会响应调控,以适应环境变化。例如,我们不能简单认为某种多胺含量越高越好,而应关注整个网络动态调节的能力。这个多胺网络不仅仅与细胞自噬相关,它还广泛参与到氧化还原平衡的维持(对抗氧化应激),蛋白质稳态的保障(确保蛋白质功能正常),以及基因表达的调控等多个核心细胞功能中。可以说,多胺的浓度和活性,是细胞生命活动的“晴雨表”和“调节器”。亚精胺与精胺,正是这个网络中的关键协同成员。它们通过代谢转化紧密联系,共同响应细胞的需求。但这并不意味着,共同参与就等同于“联合使用必然增效”。在缺乏直接的、针对特定组合在特定条件下(例如,在特定细胞模型中,以特定比例和剂量)的增效实验证据时,我们不应随意推导出“固定搭配”、“叠加效果更好”或“双重激活”等结论。这种严谨的科学态度,恰恰是我们作为专业供应商所必须坚持的。
从多胺代谢网络的视角来理解亚精胺和精胺的共同参与,有助于我们超越对单一物质的简单认知,而看到它们在细胞生命活动中的整体性、协同性和动态调节作用。
对于我们的客户而言,深刻理解这一点,意味着您可以更精准地评估,是选择单一成分(如高纯度亚精胺或精胺),还是在未来的研发中考虑其与网络中其他成分的潜在协同作用。我们的专业知识,能帮助您根据终端产品的目标(例如,是侧重于自噬的激活,还是氧化还原的平衡),来更科学地选择合适的原料。麦轮不仅提供优质的多胺原料,更希望成为您在理解和应用这些复杂生物活性物质时的严谨、可靠的合作伙伴,为您提供基于科学洞察的解决方案。
亚精胺与精胺的生物学重要性,已引起多个前沿科学领域的广泛关注。它们在不同研究场景下的作用机制和潜在价值,正被不断探索和揭示。以下是我们梳理的重点关注领域及其核心研究方向:
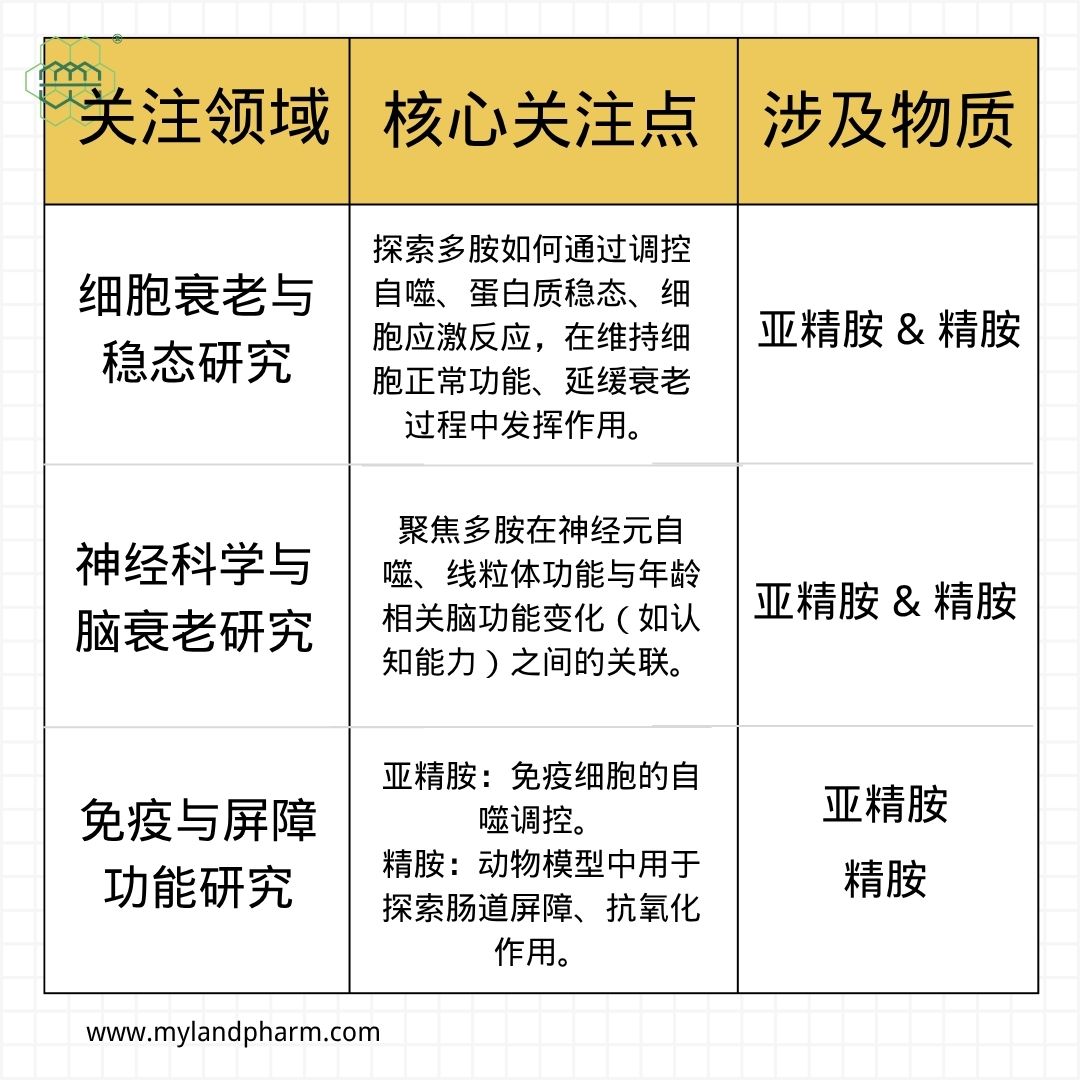
通过以上梳理,我们看到亚精胺与精胺,这对天然多胺家族中的重要成员,已成为细胞衰老、神经科学、免疫学等多个前沿研究领域的热点。它们在细胞自噬、稳态维持等核心生命过程中的独特作用,正不断被深入揭示。
从它们之间错综复杂的代谢联系,到各自在细胞自噬通路中扮演的“幕后调控者”角色,再到它们共同参与构建细胞动态平衡的宏大网络,无不体现着生命科学的精妙与复杂。每一个细微的作用机制,每一次对研究条件的审慎解读,都为我们理解生命活动提供了更深的洞察。
我们相信,随着科学研究的不断深入,亚精胺与精胺的更多潜能将被发掘,它们在促进细胞健康、延缓衰老以及支持相关产业发展方面的价值也将日益凸显。
声明:本文内容仅供科学信息交流与一般参考,不构成医疗建议、诊断依据、治疗方案或任何产品的功效承诺。文中涉及的细胞实验、动物实验及人体研究结论,均基于特定实验对象、剂量、制剂、观察时间与研究条件,不能直接外推至所有人群、所有产品形态或所有使用场景。亚精胺与精胺相关研究仍在持续发展,部分机制证据主要来自体外或动物模型,其临床意义仍需更多研究验证。读者如有健康问题、正在接受治疗、处于孕期或哺乳期,或计划使用相关膳食补充剂,请先咨询医生、药师或其他合格专业人员。
本文所提及的化合物信息不等于对任何特定产品的安全性、有效性、适用性或合规用途作出保证。实际采购与使用前,请结合产品规格书、安全技术说明书、检测报告、适用法规及自身应用要求进行核验。本文内容会随研究进展和监管要求更新,请以最新发布版本为准。
参考文献
[1].Pietrocola F, Lachkar S, Enot DP, et al. Spermidine induces autophagy by inhibiting the acetyltransferase EP300. Cell Death & Differentiation. 2015;22(3):509–516. doi:10.1038/cdd.2014.215
[2].Zhang H, Alsaleh G, Feltham J, et al. Polyamines control eIF5A hypusination, TFEB translation, and autophagy to reverse B cell senescence. Molecular Cell. 2019;76(1):110–125.e9. doi:10.1016/j.molcel.2019.08.005
[3].Xu TT, Li H, Dai Z, et al. Spermidine and spermine delay brain aging by inducing autophagy in SAMP8 mice. Aging (Albany NY). 2020;12(7):6401–6414. doi:10.18632/aging.103035
[4].Pérez-Pérez ME, Lemaire SD, Crespo JL. Autophagy induction by exogenous polyamines is an artifact of cell culture conditions. Autophagy. 2020;16(10):1807–1814. doi:10.1080/15548627.2020.1713646
